В исследовании на мышах, опубликованном в журнале «Nature Immunology», с использованием одного и того же эпитопа проводилось отслеживание клональных CD4 T-клеток. Было обнаружено, что силу мукозального CD4 T-клеточного ответа и направление формирования памяти определяет не обилие антигена, а то, доставляется ли антиген в цитозоль эпителиальных клеток кишечника: доставка антигена в цитозоль индуцирует образование внутриэпителиальных тканерезидентных T-клеток памяти (TRM), тогда как мембраносвязанные антигены смещают клетки памяти в сторону GALT. Исследование предлагает проверяемую гипотезу для разработки мукозальных вакцин.
Предпосылки исследования: одна и та же бактерия — разная судьба антигенов
Один из фундаментальных вопросов мукозального иммунитета заключается в том, как T-клетки распознают патогены. CD4 T-клетки распознают пептиды, представленные молекулами MHC класса II. Молекулы MHC класса II преимущественно экспрессируются на «профессиональных» антигенпрезентирующих клетках — дендритных клетках, макрофагах и B-клетках.
Однако эпителиальные клетки барьерных тканей при инфекции также могут индуцировать экспрессию молекул MHC класса II, выступая в роли «непрофессиональных» антигенпрезентирующих клеток. Они лишены костимулирующих молекул и не способны напрямую активировать наивные T-клетки, но могут привлекать CD4 T-клетки для оказания помощи посредством презентации антигенов патогена.
В предыдущих исследованиях было показано, что кишечный патоген мышей Citrobacter rodentium избирательно колонизирует клетки дистального отдела толстой кишки и зависит от экспрессии MHC класса II этими клетками для привлечения CD4 T-клеток, продуцирующих IL-22. Однако оставался нерешённым ключевой вопрос: какие факторы вирулентности бактерий驱动уют CD4 T-клеточный ответ? Влияет ли локализация этих белков — на поверхности бактерии, на мембране эпителиальных клеток или в цитозоле эпителиальных клеток — на качество и силу ответа?
Цель исследования: сделать «локализацию антигена» единственной переменной
Цель исследовательской группы была чёткой: при постоянной аффинности пептида к MHC класса II изменять только субклеточную локализацию антигена в клетках хозяина и наблюдать, как меняется ответ клональных CD4 T-клеток.
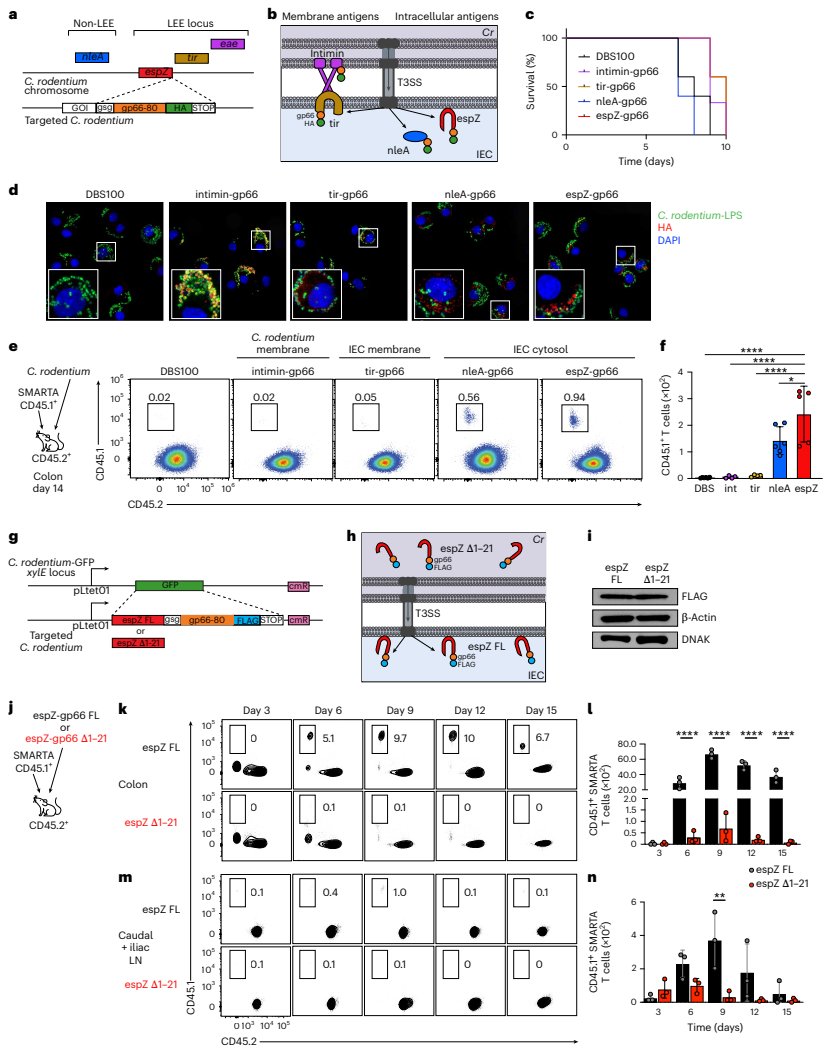
Они выбрали пептид gp66-80 вируса лимфоцитарного хориоменингита (LCMV) в качестве известного антигена для CD4 T-клеток SMARTA с трансгенным TCR и слили его с четырьмя факторами вирулентности Citrobacter rodentium: адгезином intimin, локализованным на наружной мембране бактерии; Tir, который после инъекции в эпителиальные клетки локализуется на апикальной мембране; NleA, диффузно распределённым в цитозоле; и эффекторным белком цитозоля EspZ, скапливающимся в месте прикрепления бактерии.
Таким образом, один и тот же эпитоп доставлялся различными «белками-носителями» в разные компартменты, а такие переменные, как доза антигена и аффинность пептида, были максимально проконтролированы.
Методы исследования (кратко): генно-инженерные штаммы и клональное отслеживание
Исследователи сконструировали изогенные штаммы Citrobacter rodentium, экспрессирующие указанные слитые белки, и подтвердили, что их вирулентность сопоставима с диким типом. Затем наивные CD45.1+ SMARTA T-клетки адоптивно переносили мышам, заражали их различными штаммами и в разные моменты времени после заражения выделяли антигенспецифические T-клетки из ткани толстой кишки.
Помимо количественной оценки методом проточной цитометрии, исследование сочеталось с иммунофлуоресценцией, трёхмерной визуализацией методом лайт-шит флуоресцентной микроскопии, секвенированием РНК единичных клеток, условно-нокаутными мышами и маркированием клеточных взаимодействий LIPSTIC, характеризуя T-клеточный ответ на трёх уровнях: численность, пространственное расположение и транскрипционная программа.
Ключевые результаты: доставка антигена в цитозоль даёт различия на порядки
Наиболее наглядный результат проявился на 14-й день после заражения. По сравнению с intimin-gp66, nleA-gp66 и espZ-gp66 индуцировали накопление SMARTA T-клеток в толстой кишке в 28 и 47 раз больше соответственно. При этом intimin и Tir, локализованные на мембране — будь то поверхность бактерии или мембрана эпителиальных клеток, — не индуцировали значимого ответа.
Что ещё важнее, Tir, будучи наиболее обильно детектируемым белком, почти не вызывал ответа; EspZ, обладая более низкой представленностью, индуцировал сильный ответ. Это указывает на то, что иммуногенность определяется компартментом, в котором находится антиген, а не его количеством.
Чтобы исключить влияние структурных различий четырёх белков-носителей, исследователи дополнительно сравнили полноразмерный EspZ с EspZ Δ1–21, лишённым 21 аминокислоты на N-конце. Оба белка идентичны по последовательности и эпитопу, сопоставимы по представленности и различаются лишь способностью к инъекции в цитозоль хозяина. В результате полноразмерный EspZ индуцировал более чем в 100 раз больше мукозальных SMARTA T-клеток, чем мутант Δ1–21.
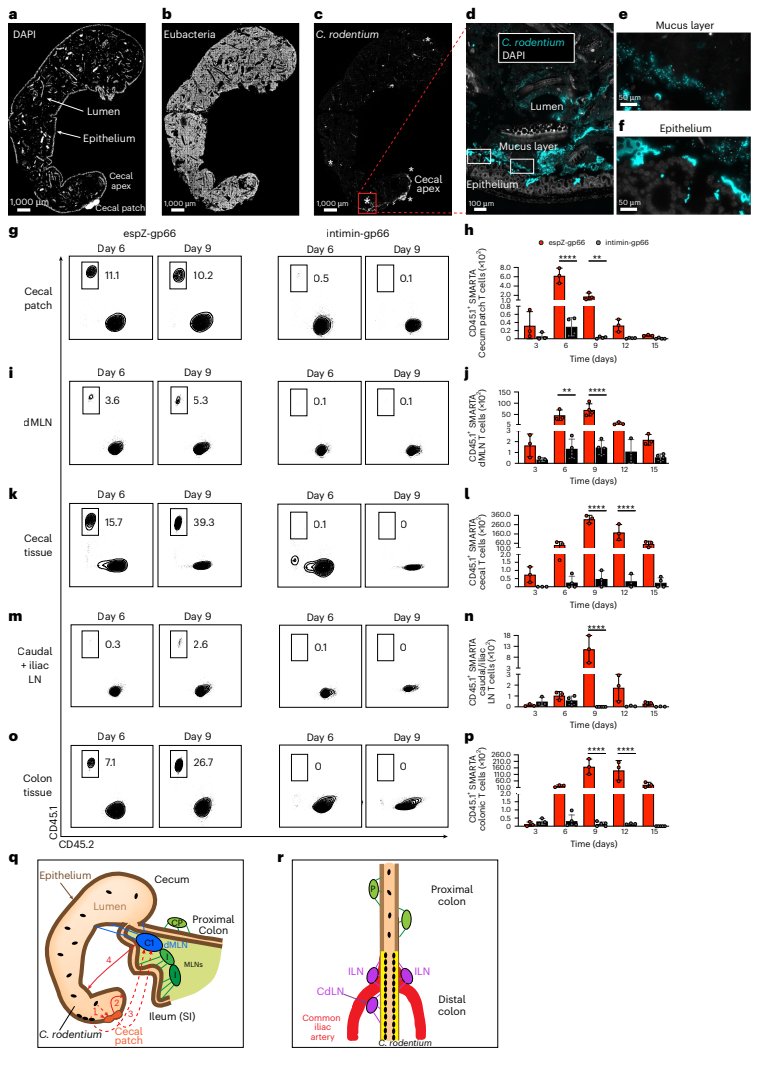
Пространственное отслеживание показало, что ответ впервые инициируется в дренирующих лимфатических узлах слепой кишки, а затем распространяется по мере продвижения бактерий в дистальный отдел толстой кишки. При этом ответ на intimin-gp66 был заметно слабее во всех участках и во все моменты времени, что указывает на то, что слабый ответ не обусловлен различиями в месте индукции.
Новаторство и прорыв: MHC класса II эпителиальных клеток формирует судьбу памяти
Исследователи задались следующим вопросом: куда впоследствии направляются эти T-клетки и чем они становятся?
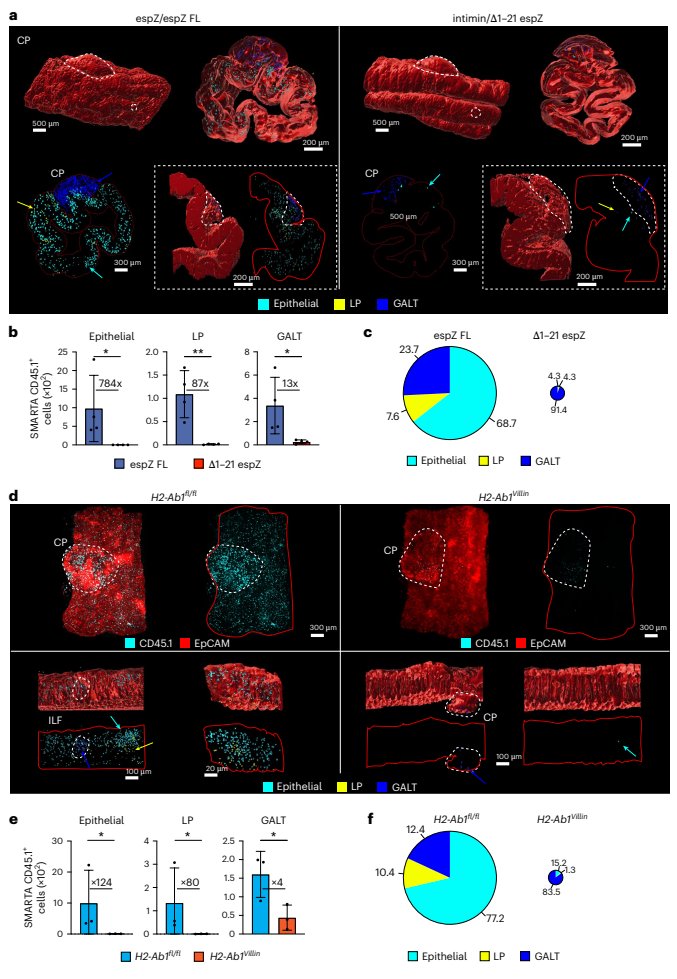
На 42-й день после заражения, то есть через три недели после элиминации бактерий, SMARTA-клетки, индуцированные цитозольным антигеном, в большом количестве присутствовали в эпителии толстой кишки, где доминировали TRM-фенотипы CD69+CD103+ и CD69+CD103−. При этом клеток памяти, индуцированных intimin-gp66, было крайне мало, и более 90% из них были ограничены GALT.
С помощью мышей с эпителий-специфическим нокаутом MHC класса II (H2-Ab1Villin) исследователи доказали, что MHC класса II эпителиальных клеток необходимы как для развития, так и для поддержания TRM. Индукция нокаута в фазе памяти также снижала число TRM, что указывает на то, что эта презентация не является однократным событием, а постоянно поддерживает внутриэпителиальные T-клетки.
Эксперименты с маркированием LIPSTIC дополнительно показали, что на 42-й день после заражения около 79% внутриэпителиальных CD4 TRM находились в MHC II-зависимом контакте с эпителиальными клетками кишечника, тогда как у T-клеток собственной пластинки такие контакты были заметно реже.
Транскриптом единичных клеток выявил, что при отсутствии эпителиальной презентации антигена T-клетки памяти переключаются на центральный миграционный фенотип, экспрессируя маркеры Klf3, Klf4, Socs3, Ccr2, тогда как транскрипты, связанные с тканевой резидентностью, такие как Itgae, Jun, Ifng, Ccl5, Gzma, снижаются.
Практическое значение: подсказки для разработки мукозальных вакцин
Значение этого исследования не ограничивается объяснением одной модели бактериальной инфекции. Оно предлагает операциональный иммунологический принцип: путь проникновения антигена в цитозоль эпителиальных клеток может определять эффективность формирования мукозальных CD4 TRM.
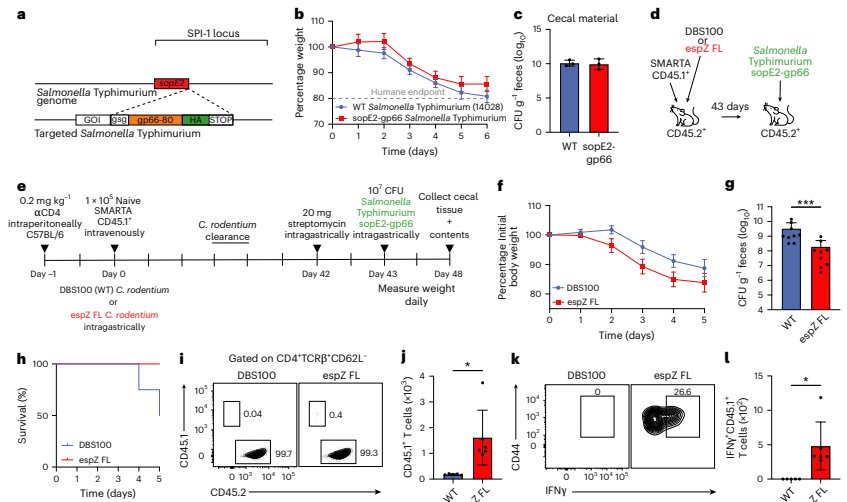
В экспериментах с гетерологичным повторным заражением у мышей, сенсибилизированных EspZ FL (цитозольная доставка), при последующем заражении Salmonella Typhimurium, экспрессирующей тот же эпитоп, бактериальная нагрузка в слепой кишке была значительно ниже, и все животные выжили в течение 5 дней; в группе сенсибилизации диким типом выжили лишь 50%. Было выделено больше SMARTA-клеток, и их способность продуцировать IFNγ после повторной стимуляции была выше.
Исследователи также указали на ограничения: это мышиная модель, использовались трансгенные клональные T-клетки и генно-инженерные штаммы, и вопрос о том, подчиняется ли мукозальный иммунитет человека тем же закономерностям, требует проверки. Кроме того, молекулярные механизмы презентации антигена эпителиальными клетками, например, зависит ли загрузка MHC класса II от макроаутофагии, ещё предстоит изучить.
Заключение и размышления
Это исследование превратило вопрос «где находится антиген» в количественно измеримую иммунологическую переменную. Один и тот же эпитоп одной и той же бактерии, лишь в зависимости от того, инъецируется ли он в цитозоль эпителиальных клеток хозяина, способен вызывать CD4 T-клеточный ответ, различающийся на порядки, и определять, останутся ли клетки памяти на эпителиальном фронте или вернутся в лимфоидную ткань.
Для разработки мукозальных вакцин и адъювантов это указывает на то, что сам путь доставки может быть частью иммуногенности. Однако остаётся открытый вопрос: можно ли в кишечнике человека безопасно и контролируемо доставлять антиген в цитозоль эпителиальных клеток и индуцировать достаточно стойкие TRM? Для ответа на него необходимы дополнительные трансляционные исследования.