Наследственные мозжечковые атаксии долгое время рассматривались как группа нейродегенеративных заболеваний, трудно поддающихся вмешательству. Когда патогенный ген кодирует секретируемый фактор организации синапсов, ситуация может быть совершенно иной. Новейшее исследование reveals, что в основе одного типа атаксии с ранним началом, вызванной биаллельными мутациями гена CBLN1, лежит дефицит внесинаптического фактора — и это состояние может быть обращено в зрелом возрасте посредством AAV-опосредованной доставки гена.
От клинического фенотипа к патогенному гену: ключевые线索 из двух семей
Исследовательская группа обнаружила пациентов с мозжечковой атаксией с ранним началом в двух семьях из Египта с близкородственными браками. Симптомы впервые появлялись в возрасте 3-4 месяцев и проявлялись аномальными движениями глаз и задержкой моторного развития. По мере прогрессирования заболевания у пациентов развивались атаксия туловища и конечностей, мышечная гипотония и прогрессирующее нарушение походки. МРТ головного мозга выявила атрофию мозжечка, наиболее выраженную в области червя.
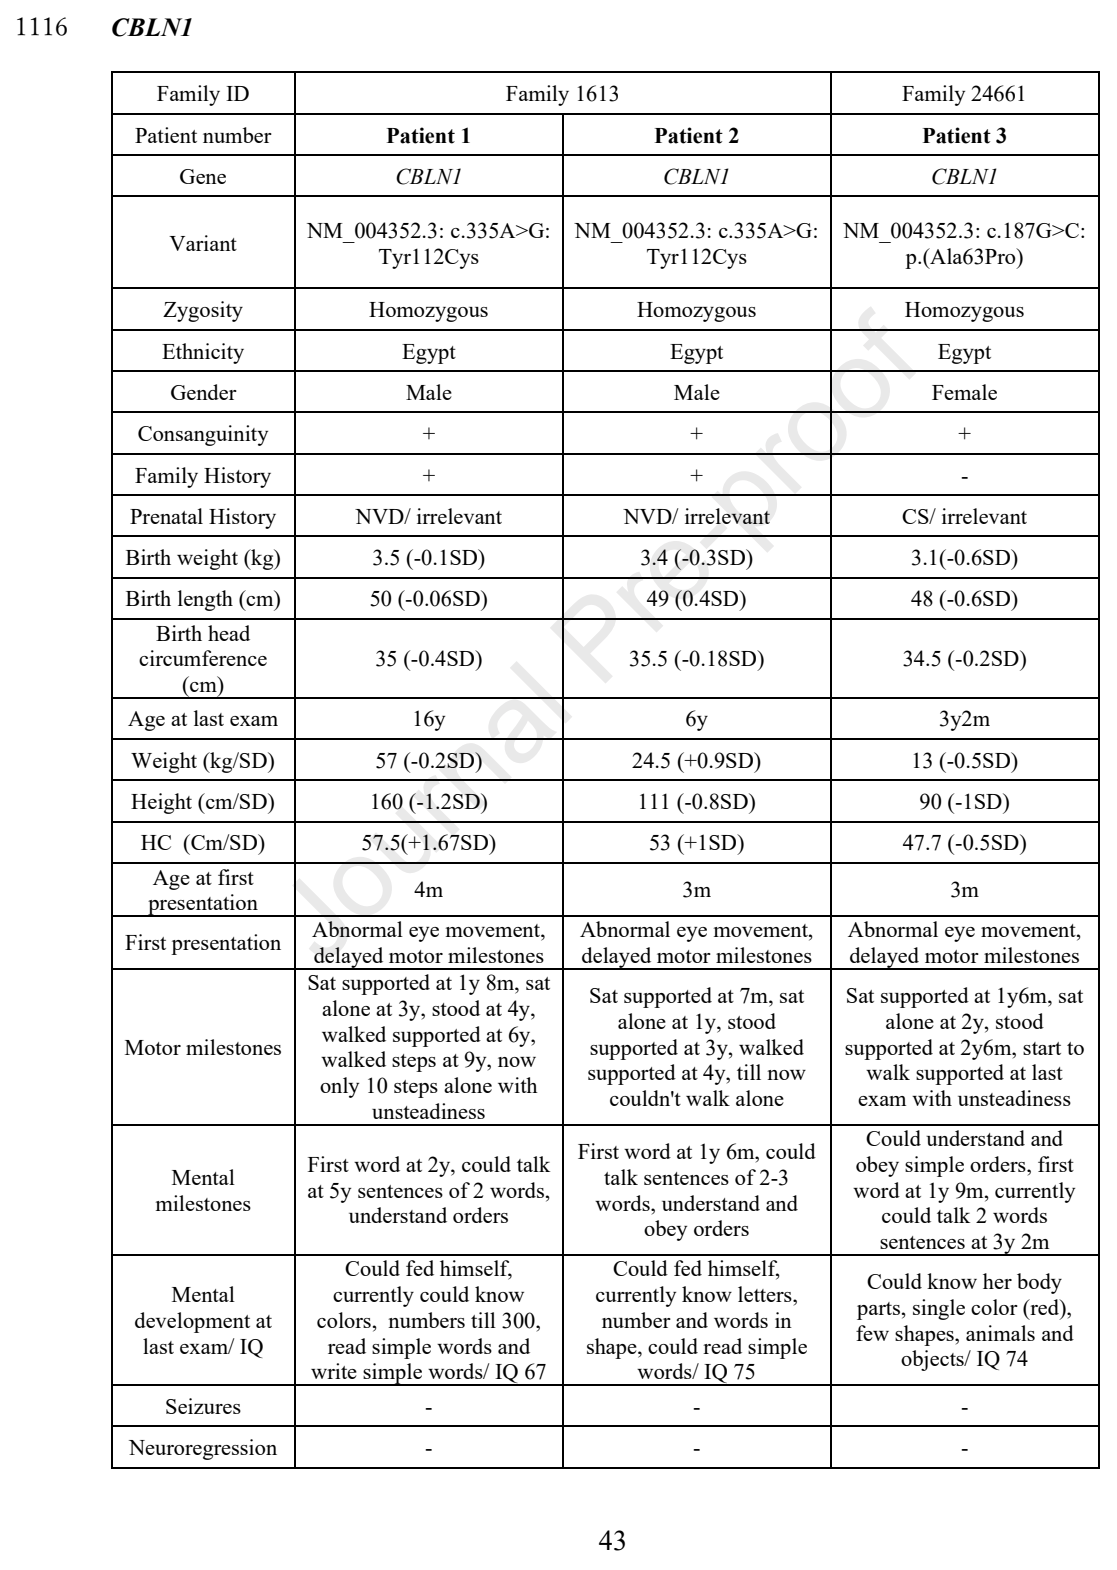
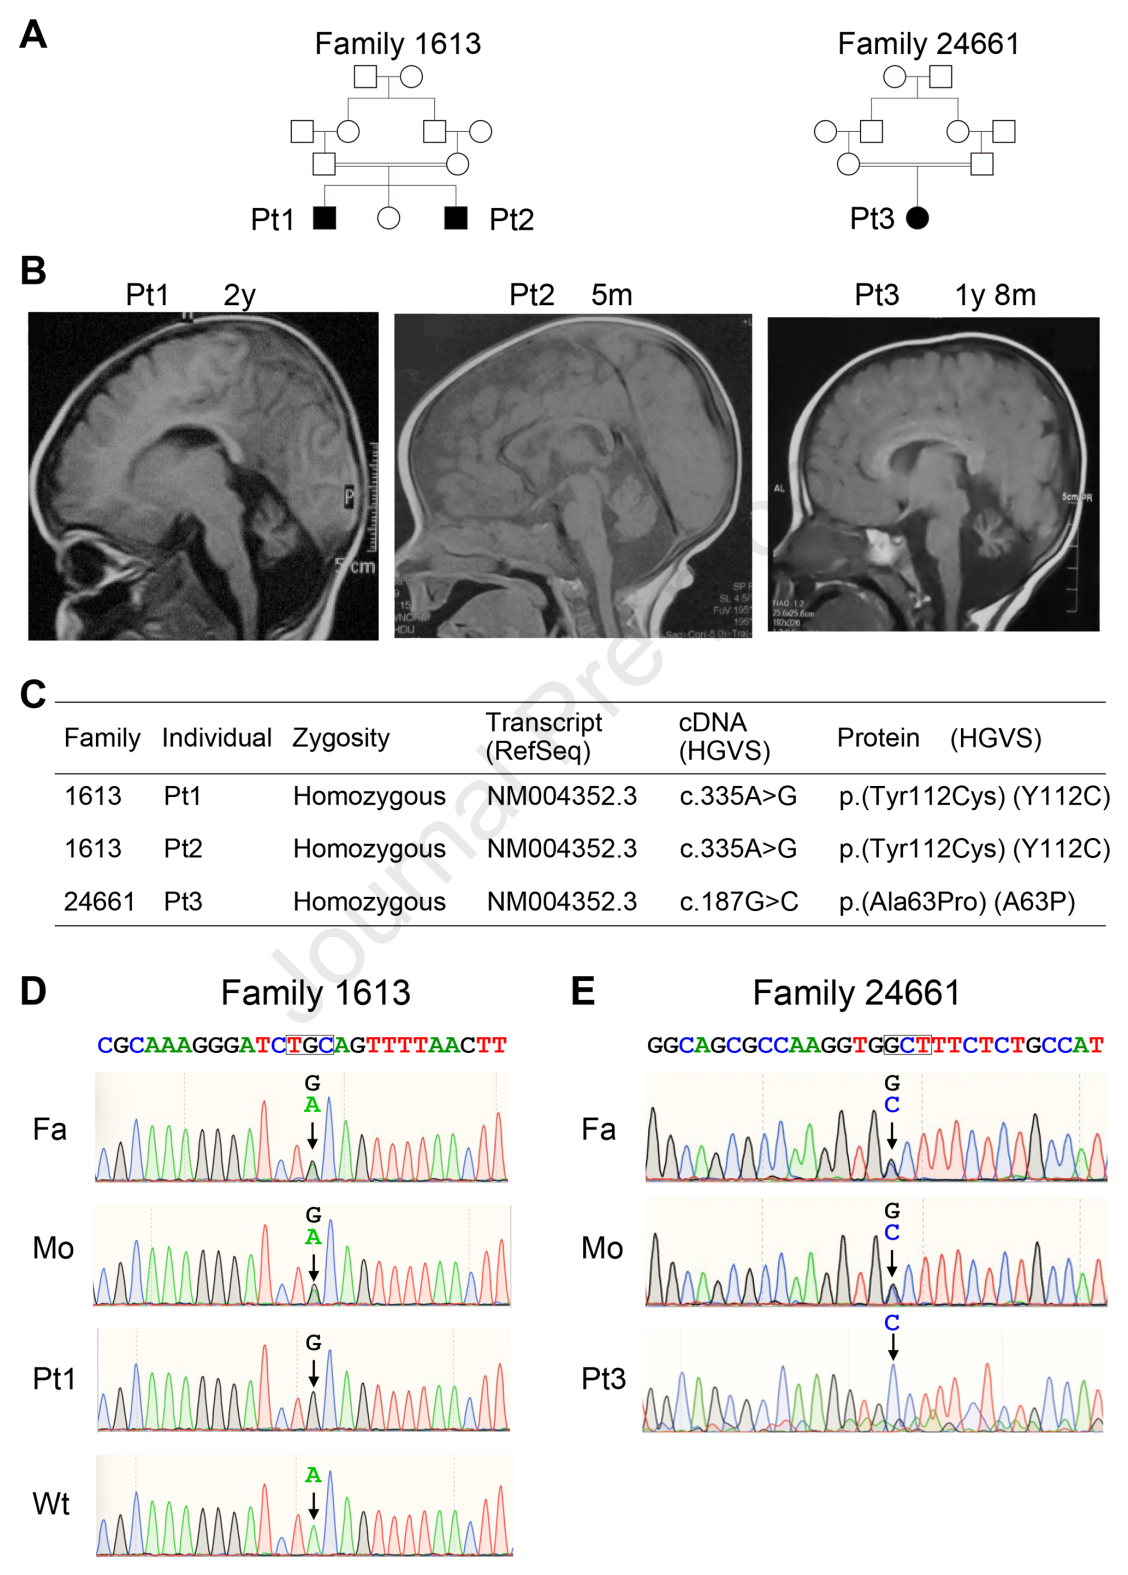
Полногеномное секвенирование выявило в двух семьях гомозиготные миссенс-мутации гена CBLN1: c.187G>C (p.A63P) и c.335A>G (p.Y112C). Секвенирование по Сэнгеру подтвердило косегрегацию мутаций с заболеванием, что соответствует аутосомно-рецессивному типу наследования.
Белок Cbln1, кодируемый CBLN1, является ключевым фактором организации синапсов параллельных волокон — клеток Пуркинье (PF-PC). Будучи секретируемым гликопротеином, он связывает пресинаптический нейрексин и постсинаптический глутаматный рецептор δ2 (GluD2), что имеет решающее значение для формирования и долговременного поддержания синапсов. Ранее у мышей с нокаутом Cbln1 наблюдались тяжёлые дефекты синапсов PF-PC, однако этот ген никогда не был подтверждён как связанный с заболеваниями человека.
Мутации приводят к функциональному внеклеточному дефициту
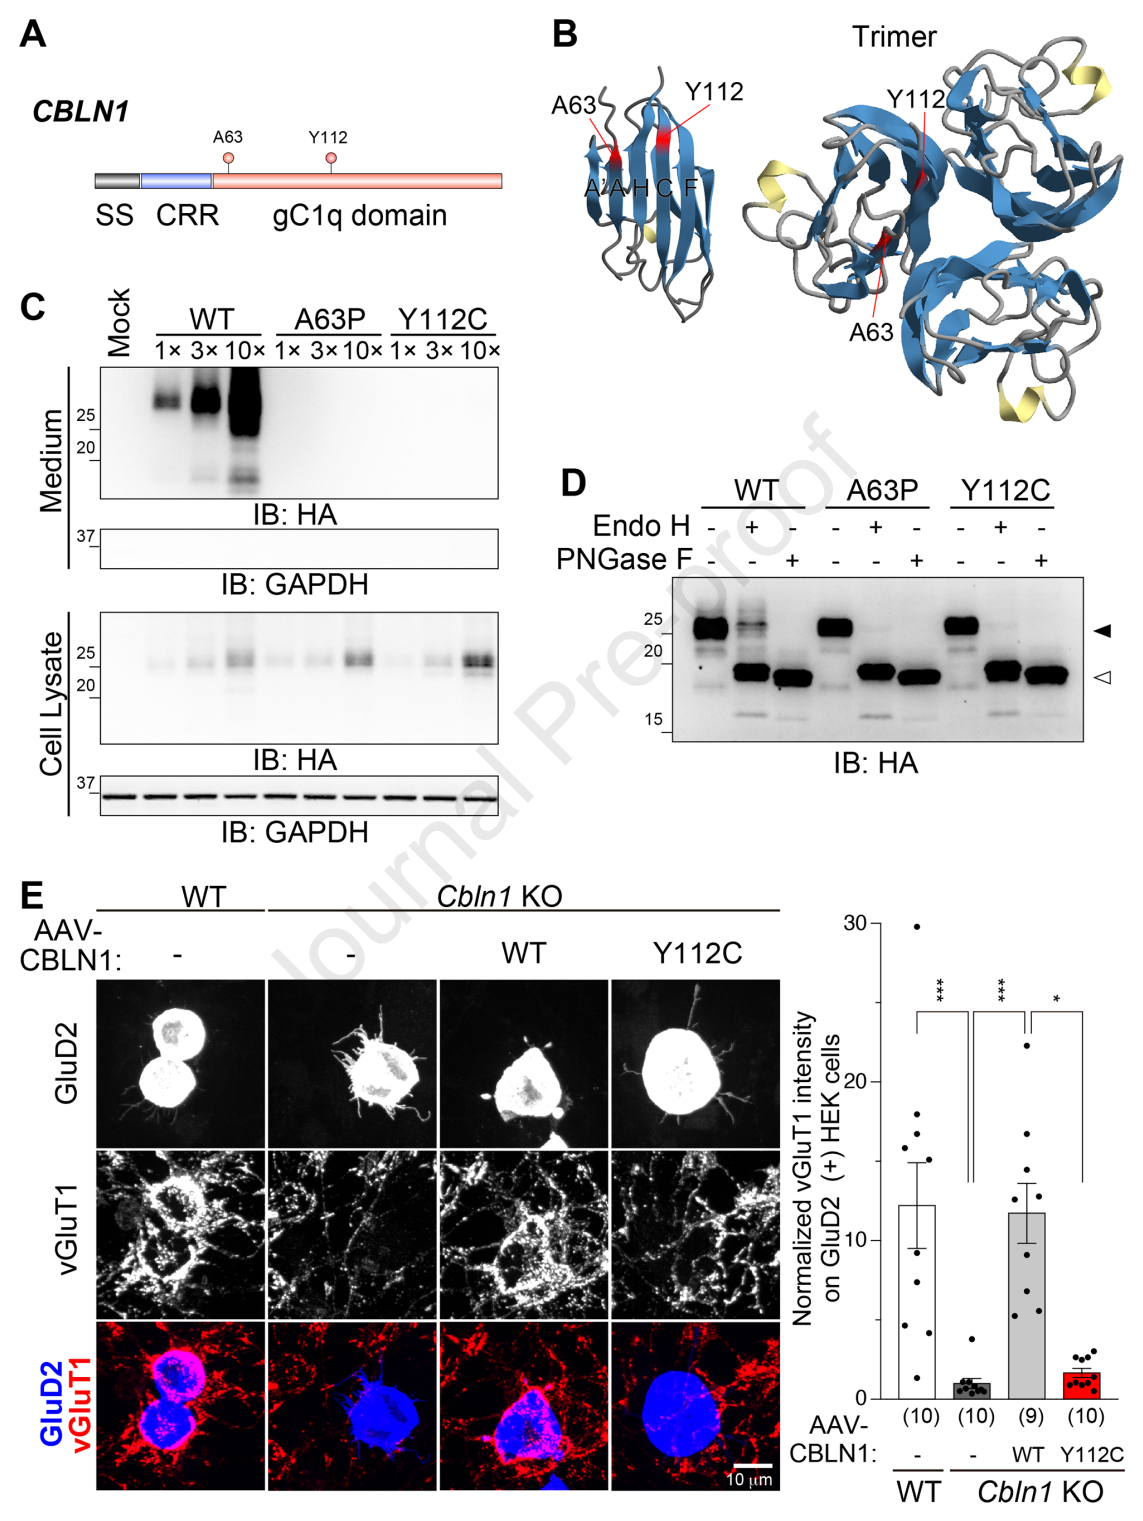
Структурный анализ локализовал остатки A63 и Y112 вблизи поверхности контакта субъединиц тримера CBLN1. Это указывает на то, что мутации могут нарушать олигомеризацию белка, а следовательно, влиять на стабильность, внутриклеточный транспорт и секрецию. Эксперименты in vitro подтвердили это предположение: стационарный уровень обоих мутантных белков в клетках HEK293 был значительно снижен, а в кондиционированной среде секретируемый белок практически не обнаруживался.
Анализ гликозилирования выявил более тонкий механизм. Дикий тип CBLN1 содержит зрелую гликоформу, устойчивую к эдогликозидазе H, что указывает на завершение процессинга белка в эндоплазматическом ретикулуме/цис-аппарате Гольджи. У обоих мутантов зрелая гликоформа была значительно уменьшена, что свидетельствует о задержке белка в раннем секреторном пути. Это нарушение антероградного транспорта напрямую приводит к резкому снижению доступности внеклеточного CBLN1.
Функциональные эксперименты дополнительно подтвердили этот вывод. В экспериментах по формированию искусственных синапсов гранулярные клетки мозжечка, экспрессирующие CBLN1-Y112C, не могли индуцировать пресинаптическую дифференцировку на клетках, экспрессирующих GluD2, что соответствовало поведению клеток с нокаутом Cbln1. Это указывает на то, что мутантный белок на функциональном уровне эквивалентен полному отсутствию.
Модель knock-in мышей: от молекулярного дефекта к поведенческому фенотипу
Для подтверждения механизма заболевания in vivo исследователи создали knock-in мышей Cbln1, несущих мутацию Y112C. Гомозиготные мутантные мыши рождались в менделевском соотношении; листовая структура и слоистая организация мозжечка в основном сохранялись, однако объём мозжечка был значительно уменьшен — площадь поперечного сечения червя была примерно на 28% меньше, чем у дикого типа, что согласуется с данными визуализации у пациентов.
Иммуногистохимия показала, что в коре мозжечка knock-in мышей сигнал синаптически локализованного Cbln1 практически не обнаруживался, что было весьма сходно с тканью с нокаутом Cbln1. Поведенческий анализ выявил ряд дефектов: мутантные мыши падали с ротационного стержня в течение нескольких секунд, анализ походки показал нарушение координации задних конечностей, а видеонистагмография регистрировала аномально увеличенные спонтанные движения глаз — точное воспроизведение двигательного и мозжечкового глазодвигательного фенотипа пациентов.
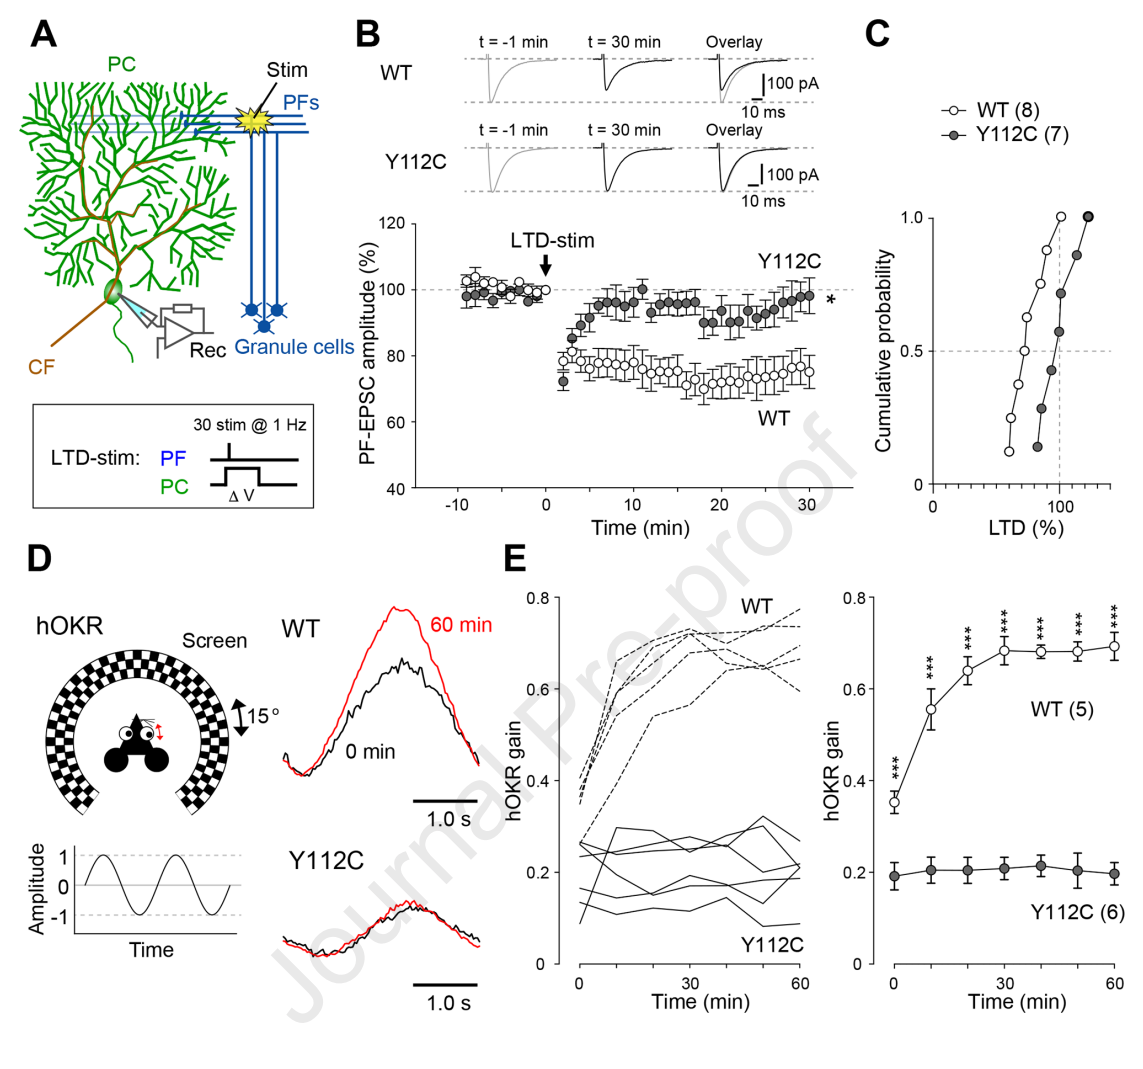
Электрофизиологические записи дополнительно уточнили аномалии на уровне синапсов. Амплитуда EPSC, вызванных PF, у мутантных мышей была значительно снижена, а парная фасилитация усилена, что указывает на снижение вероятности пресинаптического высвобождения. Что ещё важнее, долговременная депрессия (LTD) PF-PC — центральный механизм моторного обучения мозжечка — у мутантных мышей полностью отсутствовала, а способность к адаптации оптокинетического глазного ответа (OKR) была серьёзно нарушена.
AAV, нацеленный на астроциты: обратимая стратегия восстановления в зрелом возрасте
Прямая доставка рекомбинантного белка Cbln1 временно улучшала двигательную функцию мутантных мышей, но эффект сохранялся лишь около одной недели. Это побудило исследователей искать стратегию, способную обеспечить устойчивый внеклеточный CBLN1. Ключевым проектным решением был выбор клеточного источника: попытки напрямую заставить гранулярные клетки экспрессировать CBLN1 не удались из-за недостаточной активности промотора, и исследователи обратились к астроцитам.
Астроциты в молекулярном слое тесно прилегают к синапсам PF-PC, а отростки глиальных клеток Бергмана окружают синаптические структуры, формируя идеальное локальное секреторное микроокружение. Что ещё важнее, CBLN1 действует внеклеточно, и его терапевтическая эффективность зависит главным образом от внеклеточной доступности и нацеливания на синапсы, а не от обязательной экспрессии в клетках эндогенного нейронального происхождения. Ограничение трансгена не нейрональными клетками может также снизить риск того, что эктопическая нейрональная экспрессия нарушит формирование синапсов.
Исследователи создали AAV-вектор, в котором экспрессия HA-CBLN1 управляется астроцит-специфичным промотором GfaABC1D, и системно доставили его взрослым мутантным мышам посредством ретроорбитальной инъекции. Иммуногистохимия подтвердила широкую трансдукцию мозжечка; сигнал HA обогащался в молекулярном слое и колокализовался с GluD2, что указывает на успешное достижение секретируемым CBLN1 синаптических участков.
Терапевтический эффект был впечатляющим. У обработанных мышей улучшилось пре- и постсинаптическое выравнивание синапсов PF-PC, восстановилась функция передачи PF, восстановилась моноиннервация CF, успешно повторно индуцировалась LTD. На поведенческом уровне мутантные мыши восстановили способность к адаптации OKR, показатели на ротационном стержне и treadmill приблизились к уровню дикого типа, аномальные спонтанные движения глаз были скорректированы. Эти улучшения были количественно подтверждены через 1-2 месяца после инъекции, а улучшение части фенотипов сохранялось по меньшей мере 6 месяцев.
Технологические выводы и открытые вопросы
Ценность этого исследования заключается не только в установлении дефицита CBLN1 как излечимой синаптопатии, но и в том, что оно даёт множество ориентиров для разработки технологий AAV.
Стратегическое значение выбора клеток-мишеней: когда терапевтический белок функционирует внеклеточно, клетки эндогенной экспрессии не являются единственным выбором. Астроциты в качестве альтернативного источника продукции сочетают преимущества анатомической близости и широкого распространения. Это указывает на то, что при разработке технологий следует систематически оценивать пригодность различных комбинаций промотор-клетка, а не ограничиваться стремлением к специфичности по типу клеток.
Путь доставки и биораспределение: системная доставка обеспечила широкую трансдукцию мозжечка, но также вызвала эктопическую экспрессию в таких внецеребральных для мозжечка областях, как гиппокамп и кора больших полушарий. Это распределение отличается от эндогенного паттерна Cbln1 и может приводить к неизвестным внецеребральным эффектам. Для технологии это означает необходимость создания более тонкой системы оценки биораспределения вектора, различающей терапевтическое распределение и распределение потенциального риска.
Компромисс между замещением белка и долговременностью доставки гена: прямая доставка рекомбинантного белка даёт кратковременный эффект, тогда как AAV-опосредованная устойчивая экспрессия обеспечивает возможность долговременного восстановления. Это сравнение усиливает технологическую ценность доставки генов в сценариях, требующих устойчивой секреции белка, а также указывает на то, что период полувыведения и частота введения должны рассматриваться как ключевые параметры выбора стратегии доставки.
Механистическое значение обратимости в зрелом возрасте: широкий обратный разворот фенотипов указывает на то, что значительная часть патологических изменений носит функциональный, а не структурный характер. Это имеет прямое значение для отбора пациентов и дизайна клинических испытаний — даже если визуализация уже показывает атрофию мозжечка, функциональное восстановление на уровне синапсов всё ещё может принести клиническую пользу.
Вопрос, заслуживающий глубокого размышления: означает ли успех астроцитов как источника продукции секретируемых белков, что аналогичная стратегия может быть применена и к другим неврологическим заболеваниям, вызванным дефицитом секретируемых факторов организации синапсов? Когда терапевтическая мишень смещается изнутри нейронов в синаптическую щель, не следует ли переопределить наши требования к тропности вектора и устойчивости экспрессии?