Доклиническое исследование, опубликованное в журнале Science Translational Medicine, с использованием транс-сплайсинга белков на основе расщеплённых интеинов и тропных к мышцам векторов AAV восстановило полноразмерный dysferlin в мышиной модели LGMDR2; улучшение мышечной силы и патологии наблюдалось как на ранней, так и на поздней стадии заболевания. Исследование также показало, что эта стратегия превосходит традиционный двухвекторный подход на основе гомологичной рекомбинации ДНК по эффективности восстановления белка.
Проблема генной терапии, упёршаяся в предел упаковки
Пояснично-конечностная мышечная дистрофия типа R2 (LGMDR2, ранее известная как LGMD2B) вызывается мутациями в гене DYSF. Этот ген кодирует dysferlin — белок сарколеммы массой 237 кДа, участвующий в её восстановлении и содержащий семь кальций-зависимых доменов C2, два домена ferlin и C-концевой трансмембранный домен.
При дефиците dysferlin мышечные волокна не могут эффективно восстанавливать повреждения сарколеммы, вызванные механической активностью, что приводит к прогрессирующей мышечной атрофии, воспалению и слабости.
Заместительная генная терапия представляется прямым путём. Но проблема в том, что кДНК dysferlin достигает 6,2 kb, тогда как предел упаковки вектора AAV составляет около 4,7 kb.
Разница невелика, но её достаточно, чтобы полноразмерный белок «не поместился».
Укороченная версия «micro-dysferlin» уже испытывалась, однако её функция и локализация оказались неудовлетворительными. Для терапии необходим полноразмерный белок.
Два двухвекторных подхода: рекомбинация ДНК и сплайсинг белков
Чтобы обойти ограничение упаковки, научное сообщество ранее полагалось главным образом на гомологичную рекомбинацию на уровне ДНК: два AAV по отдельности несут 5′- и 3′-концевые последовательности, а полная открытая рамка считывания собирается за счёт тандемной рекомбинации векторных геномов.
Эта стратегия уже дошла до исследований внутримышечных инъекций человеку (NCT02710500), но имеет несколько присущих ей недостатков: высокая требуемая доза вируса, ограниченная эффективность рекомбинации и возможное образование аномальных транскриптов в результате неспецифической рекомбинации.
Предлагаемая в настоящем исследовании альтернатива — транс-сплайсинг белков (PTS). Он не зависит от рекомбинации ДНК, а на посттрансляционном уровне бесшовно соединяет два полипептидных фрагмента с помощью расщеплённых интеинов.
Модульная доменная архитектура dysferlin и N-конец, обращённый в цитозоль, делают его пригодным для разделения без нарушения способности к нацеливанию на сарколемму.
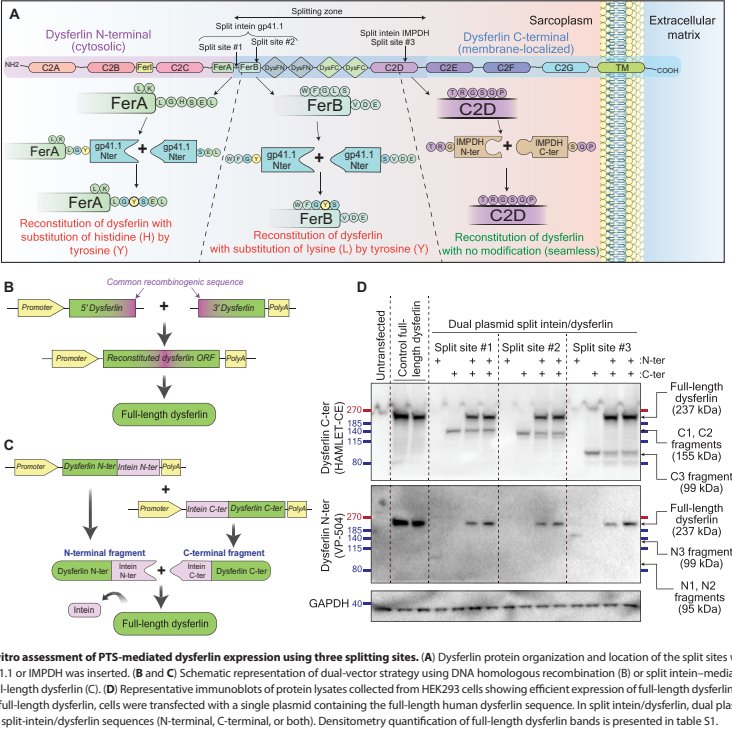
Авторы предсказали три сайта в последовательности dysferlin, пригодных для вставки split intein. Среди них интеин IMPDH в сайте 3 (между Gly1263 и Ser1264) обеспечивает «безрубцовое» соединение, а при иммуноблоттинге даёт наибольшую экспрессию полноразмерного белка.
Проверка in vitro: способен ли восстановленный белок починить сарколемму
В клетках HEK293 все три комбинации интеинов позволяли восстановить полноразмерный dysferlin, но IMPDH в сайте 3 давал наивысший уровень экспрессии.
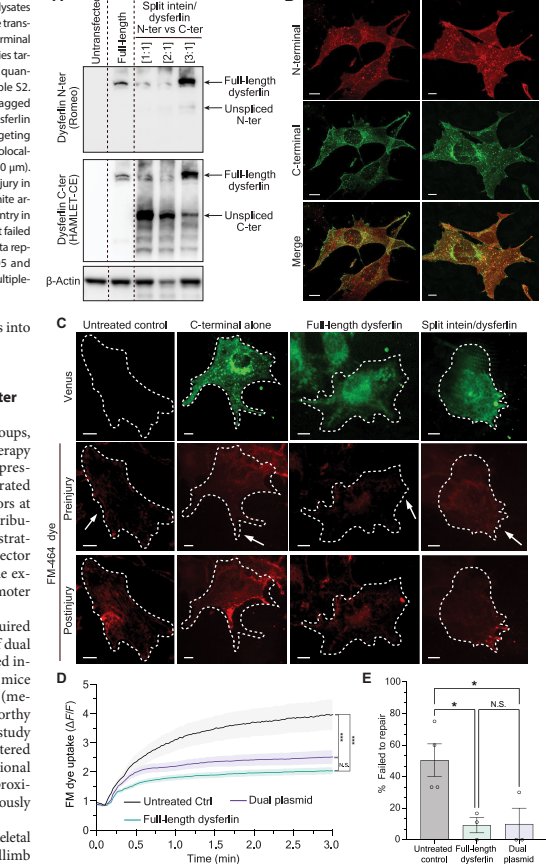
Затем исследование проверило функцию в дефицитных по dysferlin миобластах C2C12. При котрансфекции N-концевой и C-концевой плазмид в соотношении 3:1 экспрессия полноразмерного белка была стабильной.
Эксперименты с лазерным повреждением показали: в клетках, экспрессирующих dysferlin на основе расщеплённых интеинов, проникновение красителя было значительно снижено (P = 0,0075), а доля неудачных попыток восстановления упала более чем в четыре раза.
Это означает, что восстановленный белок не просто «присутствует» — функционально он близок к полноразмерному dysferlin, экспрессируемому с одного вектора.
Сравнение in vivo: где проявляется разница в эффективности
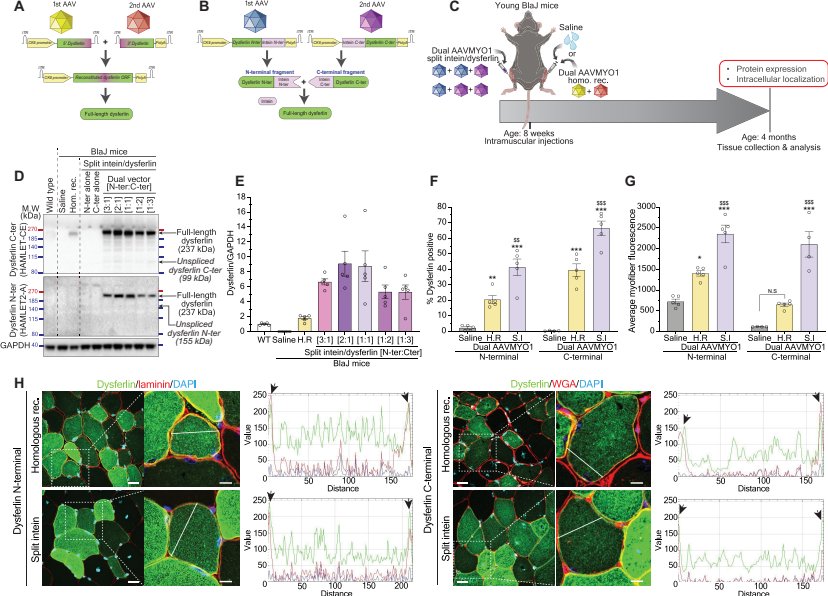
В исследовании SI-Dysf и HR-Dysf были по отдельности упакованы в тропный к мышцам вектор AAVMYO1, экспрессия которого управляется мышечно-специфичным промотором CK8e.
После инъекции одинаковой суммарной дозы (6×10¹⁰ vg) в переднюю большеберцовую мышцу 8-недельных мышей BlaJ образцы отбирали через четыре месяца. Все соотношения N:C для SI-Dysf давали более высокий уровень полноразмерного белка, чем HR-Dysf, причём оптимальными были соотношения 2:1 и 1:1.
Иммуноокрашивание показало, что число dysferlin-положительных мышечных волокон в группе SI-Dysf примерно вдвое превышало таковое в группе HR-Dysf, а сигнал был ярче.
Что ещё важнее: в группе SI-Dysf несплайсированные N-концевые или C-концевые фрагменты практически не обнаруживались. В группе HR-Dysf же уровень экспрессии dysferlin примерно вдвое превышал таковой у дикого типа — но включал укороченные фрагменты.
Доза и распределение при системной доставке
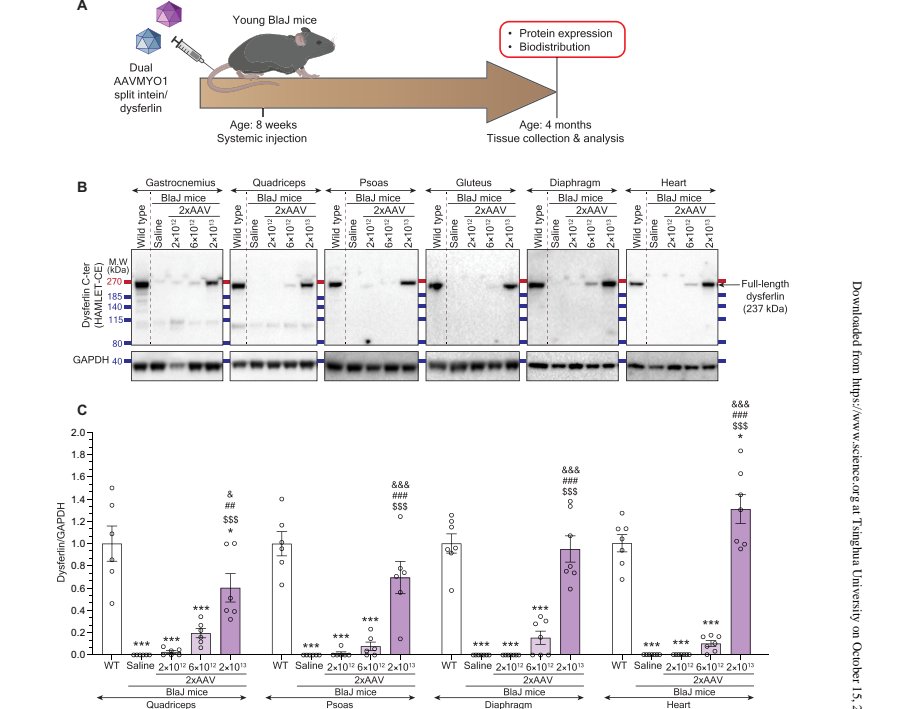
LGMDR2 затрагивает несколько мышечных групп, и локальная инъекция не способна их охватить. В исследовании через хвостовую вену вводили три дозы: 2×10¹², 6×10¹² и 2×10¹³ vg/кг.
Через два месяца в группе низкой дозы полноразмерный белок не обнаруживался; в группе средней дозы он составлял около 10–40% от уровня дикого типа; в группе высокой дозы в четырёхглавой мышце бедра и поясничной мышце он достигал около 70%, а в диафрагме и сердце — ещё выше.
Примечательно, что самая высокая доза всё ещё в десять раз ниже доклинических или клинических доз традиционных серотипов AAV, применяемых при мышечных заболеваниях, и примерно в пять раз ниже, чем в предыдущей схеме HR-Dysf.
Ранняя и поздняя стадии заболевания: различия по функциональным конечным точкам
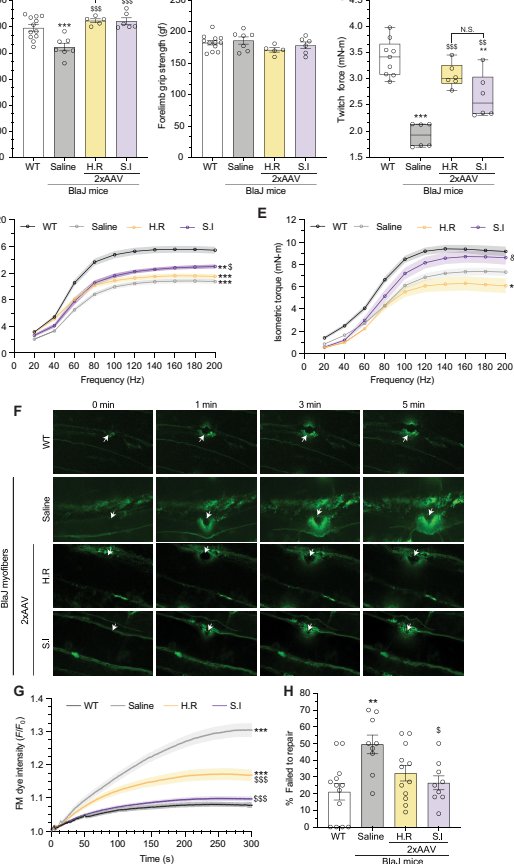
У 6-месячных мышей BlaJ (начальная стадия заболевания) при системном введении 2×10¹³ vg/кг оценку проводили через шесть месяцев.
В группе SI-Dysf уровень dysferlin в камбаловидной и четырёхглавой мышцах достигал 60–70% от уровня дикого типа, тогда как в группе HR-Dysf — лишь 5–15%. Количественная оценка векторных геномов показала сходное присутствие AAV в обеих группах — разница обусловлена эффективностью сплайсинга, а не эффективностью доставки.
Гистологически в группе SI-Dysf уменьшалось число волокон с центрально расположенными ядрами, увеличивалась площадь поперечного сечения мышечных волокон, снижалась жировая инфильтрация.
Функционально дефицит силы хвата всей конечности был предотвращён, сила подёргивания камбаловидной мышцы восстановилась, а восстановление силы после эксцентрического сокращения было лучше. Эксперименты с лазерным повреждением показали, что способность мышечных волокон к восстановлению в группе SI-Dysf приближалась к таковой у дикого типа, а доля неудачных попыток восстановления снизилась почти вдвое.
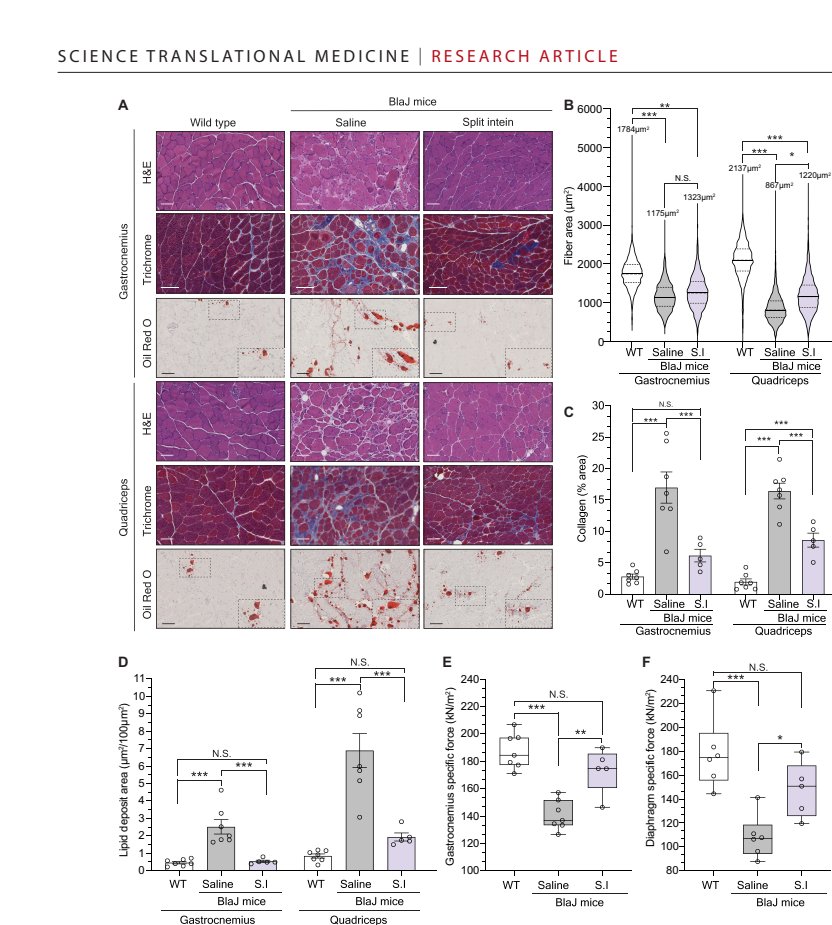
У 12-месячных мышей (поздняя стадия симптомов) после шести месяцев лечения той же дозой уровень dysferlin в камбаловидной мышце и диафрагме достигал или даже превышал уровень дикого типа, а в четырёхглавой мышце составлял 2–3 раза от уровня дикого типа.
Площадь фиброза снизилась примерно с 18% до 6–9%, отложение липидов значительно уменьшилось, улучшилась специфическая сократимость камбаловидной мышцы и диафрагмы.
Взгляд с точки зрения технологии: что оставило это исследование
С точки зрения разработки технологии AAV, в этой работе есть несколько наблюдений, которые стоит зафиксировать.
Во-первых, контроль соотношения двух векторов — это технологический параметр, а не второстепенная деталь. Соотношение N:C in vivo влияет на выход полноразмерного белка и на остаточные несплайсированные фрагменты. Соотношения 1:1 и 2:1 показали себя наилучшим образом, но вопрос о том, как обеспечить согласованность соотношения между партиями, — это вопрос, на который необходимо ответить при масштабировании производства.
Во-вторых, эффективность сплайсинга может частично компенсировать потребность в дозе. При одинаковом уровне векторных геномов выход белка при стратегии PTS значительно выше, чем при рекомбинации ДНК. Это означает, что в стремлении к терапевтическому эффекту дизайн вектора может оказаться эффективнее простого повышения дозы.
В-третьих, детекция укороченных фрагментов должна быть включена в поле зрения контроля качества. Наличие несплайсированных N-концевого (155 кДа) и C-концевого (99 кДа) фрагментов при иммуноблоттинге указывает на то, что анализ примесей, связанных с продуктом, на уровне белка не может ограничиваться только полноразмерной полосой.
В-четвёртых, само исследование оставляет нерешённые вопросы. Авторы отмечают: расщеплённые интеины в большинстве своём происходят из микроорганизмов, и их экспрессия, период полужизни и иммуногенность в клетках человека пока неясны; иммунные ответы на вектор AAV, компоненты интеинов и восстановленный dysferlin также не были глубоко охарактеризованы.
Кроме того, экспрессия dysferlin носит мозаичный характер — не все мышечные волокна экспрессируют его равномерно. Как добиться более равномерного распределения с помощью капсидов следующего поколения, тропных к мышцам, более сильных мышечно-специфичных кассет экспрессии или модификации последовательности белка, остаётся открытым вопросом.
Когда ёмкость вектора становится жёстким ограничением — продолжать ли искать решения для рекомбинации на уровне ДНК или заново проектировать логику сплайсинга на уровне белка? Этот выбор, возможно, повлияет не только на одну мишень dysferlin.