Векторы на основе аденоассоциированного вируса (AAV) широко используются в генной терапии, однако их природный тропизм слишком широк. Это порождает давнее противоречие: чтобы заставить его инфицировать лишь определённый тип клеток, обычно приходится модифицировать капсид; но как только капсид изменяют, это часто затрагивает продуктивность, сборку и инфекционность.
Недавнее исследование, посвящённое нейробластоме, предложило иной подход. Исследователи ввели в капсид AAV9 систему ковалентной конъюгации SpyTag/SpyCatcher и перенаправили тропизм вируса с помощью фрагментов антител. Детали этого процесса представляют немалую ценность для разработчиков векторов.
Логика конструирования «нейтрального» капсида
В исследовании был выбран не обычный AAV9, а мутант AAV9-W503A. Эта мутация нарушает связывание капсида с галактозой, из-за чего вирус почти полностью утрачивает способность к естественному инфицированию.
Иными словами, это «пустой упаковочный вектор». Его природный тропизм обнулён, и то, кого он впоследствии инфицирует, полностью определяется таргетными молекулами, прикреплёнными к его поверхности.
Исследователи вставили SpyTag, состоящий всего из 13 аминокислот, в позицию 453 вариабельной области IV капсида. Ранее было показано, что этот сайт поддаётся редактированию и не влияет на продуктивность и инфекционность вируса. Соответствующий SpyCatcher был слит с scFv против GD2.
При встрече они самопроизвольно образуют ковалентную изопептидную связь. Весь процесс не требует дополнительной химической сшивки.
Два пути конъюгации, два результата
В исследовании сравнили два технологических маршрута.
Первый — «конъюгация после продукции»: вирусные частицы и очищенный белок SpyCatcher-scFv получают по отдельности, а затем смешивают и инкубируют в различных соотношениях.
Результат оказался неудовлетворительным. У слитого белка scFv, выделенного из супернатанта, наблюдался сдвиг молекулярной массы, который, как подтвердил эксперимент по дегликозилированию, был обусловлен гликозилированием. Что ещё важнее, эффективность конъюгации была низкой — даже при крайнем соотношении 1:800 оставалось большое количество неконъюгированного белка, которое трудно удалить и при очистке фильтрацией.
Второй — «конъюгация при коэкспрессии»: плазмиду, кодирующую scFv-SpyCatcher, вместе с упаковочными плазмидами AAV трансфицируют в клетки HEK293T.
Этот маршрут обеспечивает ковалентное связывание внутри клетки, и после очистки в градиенте иодоксанола свободный белок практически отсутствует. scFv, экспрессируемый внутри клетки, не подвергается гликозилированию, к тому же отпадает стадия очистки белка. Многократные независимые препаративные получения показали стабильность титра вируса.
Основываясь на этих результатах, исследователи в дальнейшем полностью перешли на маршрут коэкспрессии.
Чем больше конъюгации, тем хуже инфекция
Одно контринтуитивное открытие касалось плотности конъюгации.
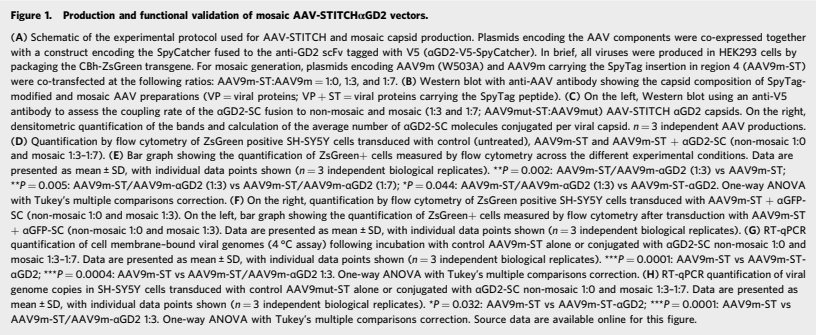
Количественная оценка методом Western blot показала, что в нехимерных условиях конъюгируется около 13±3% VP3; при расчёте примерно на 50 молекул VP3 на капсид в среднем каждый капсид несёт 7–8 молекул scFv.
Однако высокая плотность конъюгации, напротив, подавляла инфекцию. На GD2-положительных клетках SH-SY5Y эффективность трансдукции нехимерного вектора составила менее 10%.
Исследователи предположили стерическое затруднение — слишком плотные поверхностные молекулы экранируют распознавание капсида с корецептором. Эксперименты по связыванию при 4°C показали, что у химерного капсида мембранное связывание, напротив, снижается, что указывает на то, что проблема не в адсорбции, а в последующих этапах проникновения в клетку или внутриклеточного транспорта.
Химера 1:3: эмпирическая точка баланса
Чтобы проверить гипотезу стерического затруднения, исследователи смешивали в различных соотношениях плазмиды Rep-Cap, содержащие и не содержащие SpyTag, и получали химерные капсиды.
При соотношении 1:3 число молекул scFv на капсид снижалось до 2–3, однако эффективность трансдукции более чем в 6 раз превышала таковую в нехимерных условиях. При соотношении 1:7 число конъюгатов было менее 1, и эффективность снижалась.
Эта конфигурация 1:3 была названа AAV-STITCHαGD2. Её специфичность также была подтверждена: при замене на нерелевантный scFv против GFP трансдукция полностью исчезала; после принудительной экспрессии GD2-синтазы в клетках HEK293T, изначально не экспрессирующих GD2, трансдуцировались только GD2-положительные клетки.
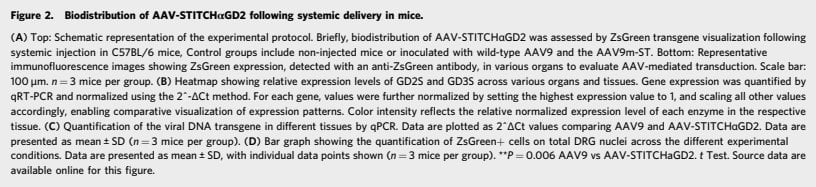
Распределение in vivo дополнительно подтвердило специфичность. После внутривенной инъекции экспрессия ZsGreen не обнаруживалась в печени, сердце, мышцах, мозге и лёгких; единственным исключением стал дорсальный корешковый ганглий — что согласуется с известной экспрессией GD2 в этой области.
Технологические уроки и нерешённые вопросы
Ценность этой работы не только в терапевтических результатах, но и в выявленных технологических закономерностях.
Во-первых, существует оптимальный диапазон плотности конъюгации. Поверхностная модификация — не всегда чем больше, тем лучше; избыток лиганда может нарушать естественный путь проникновения капсида в клетку. Соотношение 1:3 — это надёжная отправная точка, но исследователи прямо указывают, что оно не обязательно универсально.
Во-вторых, маршрут коэкспрессии переносит конъюгацию из «после продукции» в «во время продукции», что упрощает процесс и позволяет избежать гетерогенности, обусловленной гликозилированием секретируемого белка. Это благоприятно для масштабирования производства.
В-третьих, использование инфекционно-дефектного капсида в качестве основы позволяет свести риск нецелевого действия к довольно низкому уровню, ценой чего становится необходимость полагаться на экзогенные таргетные молекулы для проявления эффекта.
Остаётся немало вопросов без ответа: на каком именно этапе цикла трансдукции блокирует избыток scFv? Можно ли рационально предсказать соотношение химеры, а не полагаться на эмпирический отбор? Сохранится ли это соотношение, если заменить таргетную молекулу с scFv на другой лиганд?
Для тех, кто занимается технологией векторов, эти вопросы, возможно, заслуживают большего осмысления, чем данные об эффективности.